Die Grundlagen der Vererbung
Von Prof. Dr. Hans Nachtsheim, Berlin-Dahlem
RDKl Jahrbuch für Kaninchenzüchter 1936
Aus dem befruchteten Ei eines Huhnes wird immer wieder ein Huhn, aus dem eines Kaninchens immer wieder ein Kaninchen hervorgehen. Jede Art erzeugt immer nur ihresgleichen. Das erscheint uns so selbstverständlich, dass wir nicht lange nach den Ursachen fragen. Aber es geht weiter. Nicht irgendein Kaninchen entsteht aus dem befruchteten Kaninchenei. Sind die Erzeuger der beiden Geschlechtszellen, die sich zum befruchteten Ei verbunden haben, Deutsche Widderkaninchen, so wird auch das Kind ein Deutscher Widder sein, sind die Erzeuger Blaue Wiener, so wird das Kind ebenfalls dieser Rasse angehören. Nicht nur die Artmerkmale der Vorfahren finden wir bei den Nachkommen wieder, ebenso werden die Merkmale der Rasse vererbt. Doch nicht genug damit. Jeder Stamm, jede Familie innerhalb einer Rasse hat ihre Besonderheiten, die wir im Laufe der Generationen immer wieder erscheinen sehen. Es sind tausenderlei Merkmale, die vererbt werden, grobe und feine, gute und schlechte, gesunde und krankhafte. Je mehr wir aber sehen, dass Merkmale bis zu den kleinsten Einzelheiten vererbt werden, umso mehr fragen wir uns staunend, wie das denn möglich ist. Die beiden Geschlechtszellen, Ei und Samenzelle, aus denen das Kind entsteht, sind doch winzig kleine Gebilde. Haben denn sie schon alle diese Merkmale? Wenn etwa der Vater einen kleinen blauen Fleck in der im Übrigen braunen Regenbogenhaut des Auges auf sein Kind vererbt – wie kann das durch den Samenfaden geschehen? Man hat in früheren Zeiten tatsächlich geglaubt, in dem Samenfaden sei das Lebewesen schon mit allen seinen Merkmalen in kleinster Form enthalten. So sollte in dem menschlichen Samenfaden ein winziges Menschlein verborgen sein. Das Ei, so stellte man sich vor, dient diesem Menschlein als Nährboden, in dem es zum Kinde heranwächst. Die Mutter sollte also nur die Rolle einer Amme spielen; als den für die Vererbung wichtigen Teil betrachtete man den Vater. Dass diese Ansicht falsch ist, lehrt uns jedoch schon die tägliche Erfahrung. Das Kind ist ein Mischprodukt aus beiden Eltern. Zwar kann ein Kind einmal „ganz der Vater“ sein, aber ebenso kommt es vor, dass es der Mutter „wie aus dem Gesicht geschnitten“ ist, und im großen Durchschnitt betrachtet erbt das Kind von seiner Mutter nicht weniger als vom Vater.
Wir wissen heute, dass nicht die Merkmale selbst vererbt werden, sondern nur die Anlagen dazu. Nur das, was durch bestimmte Erbanlagen in den Geschlechtszellen irgendwie verankert ist, wird von den Eltern auf die Kinder vererbt, Vererbung beruht auf dem Vorhandensein gleicher Erbanlagen bei Vorfahren und Nach- kommen. Was aber haben wir uns unter solchen Erbanlagen vorzustellen, wo sind sie zu suchen, wie sind sie beschaffen, wie wirken sie? Auf einige dieser Fragen wollen wir versuchen, eine Antwort zu geben.
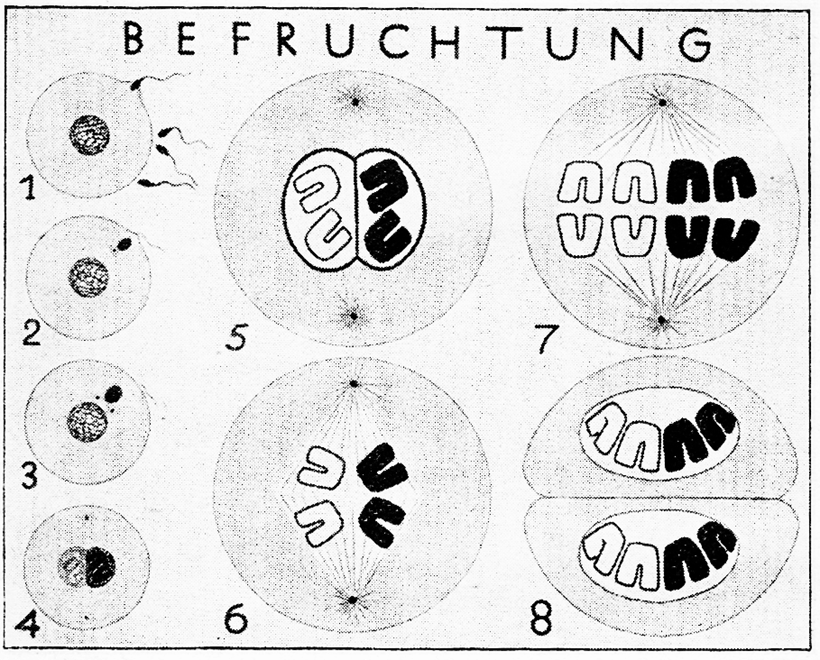
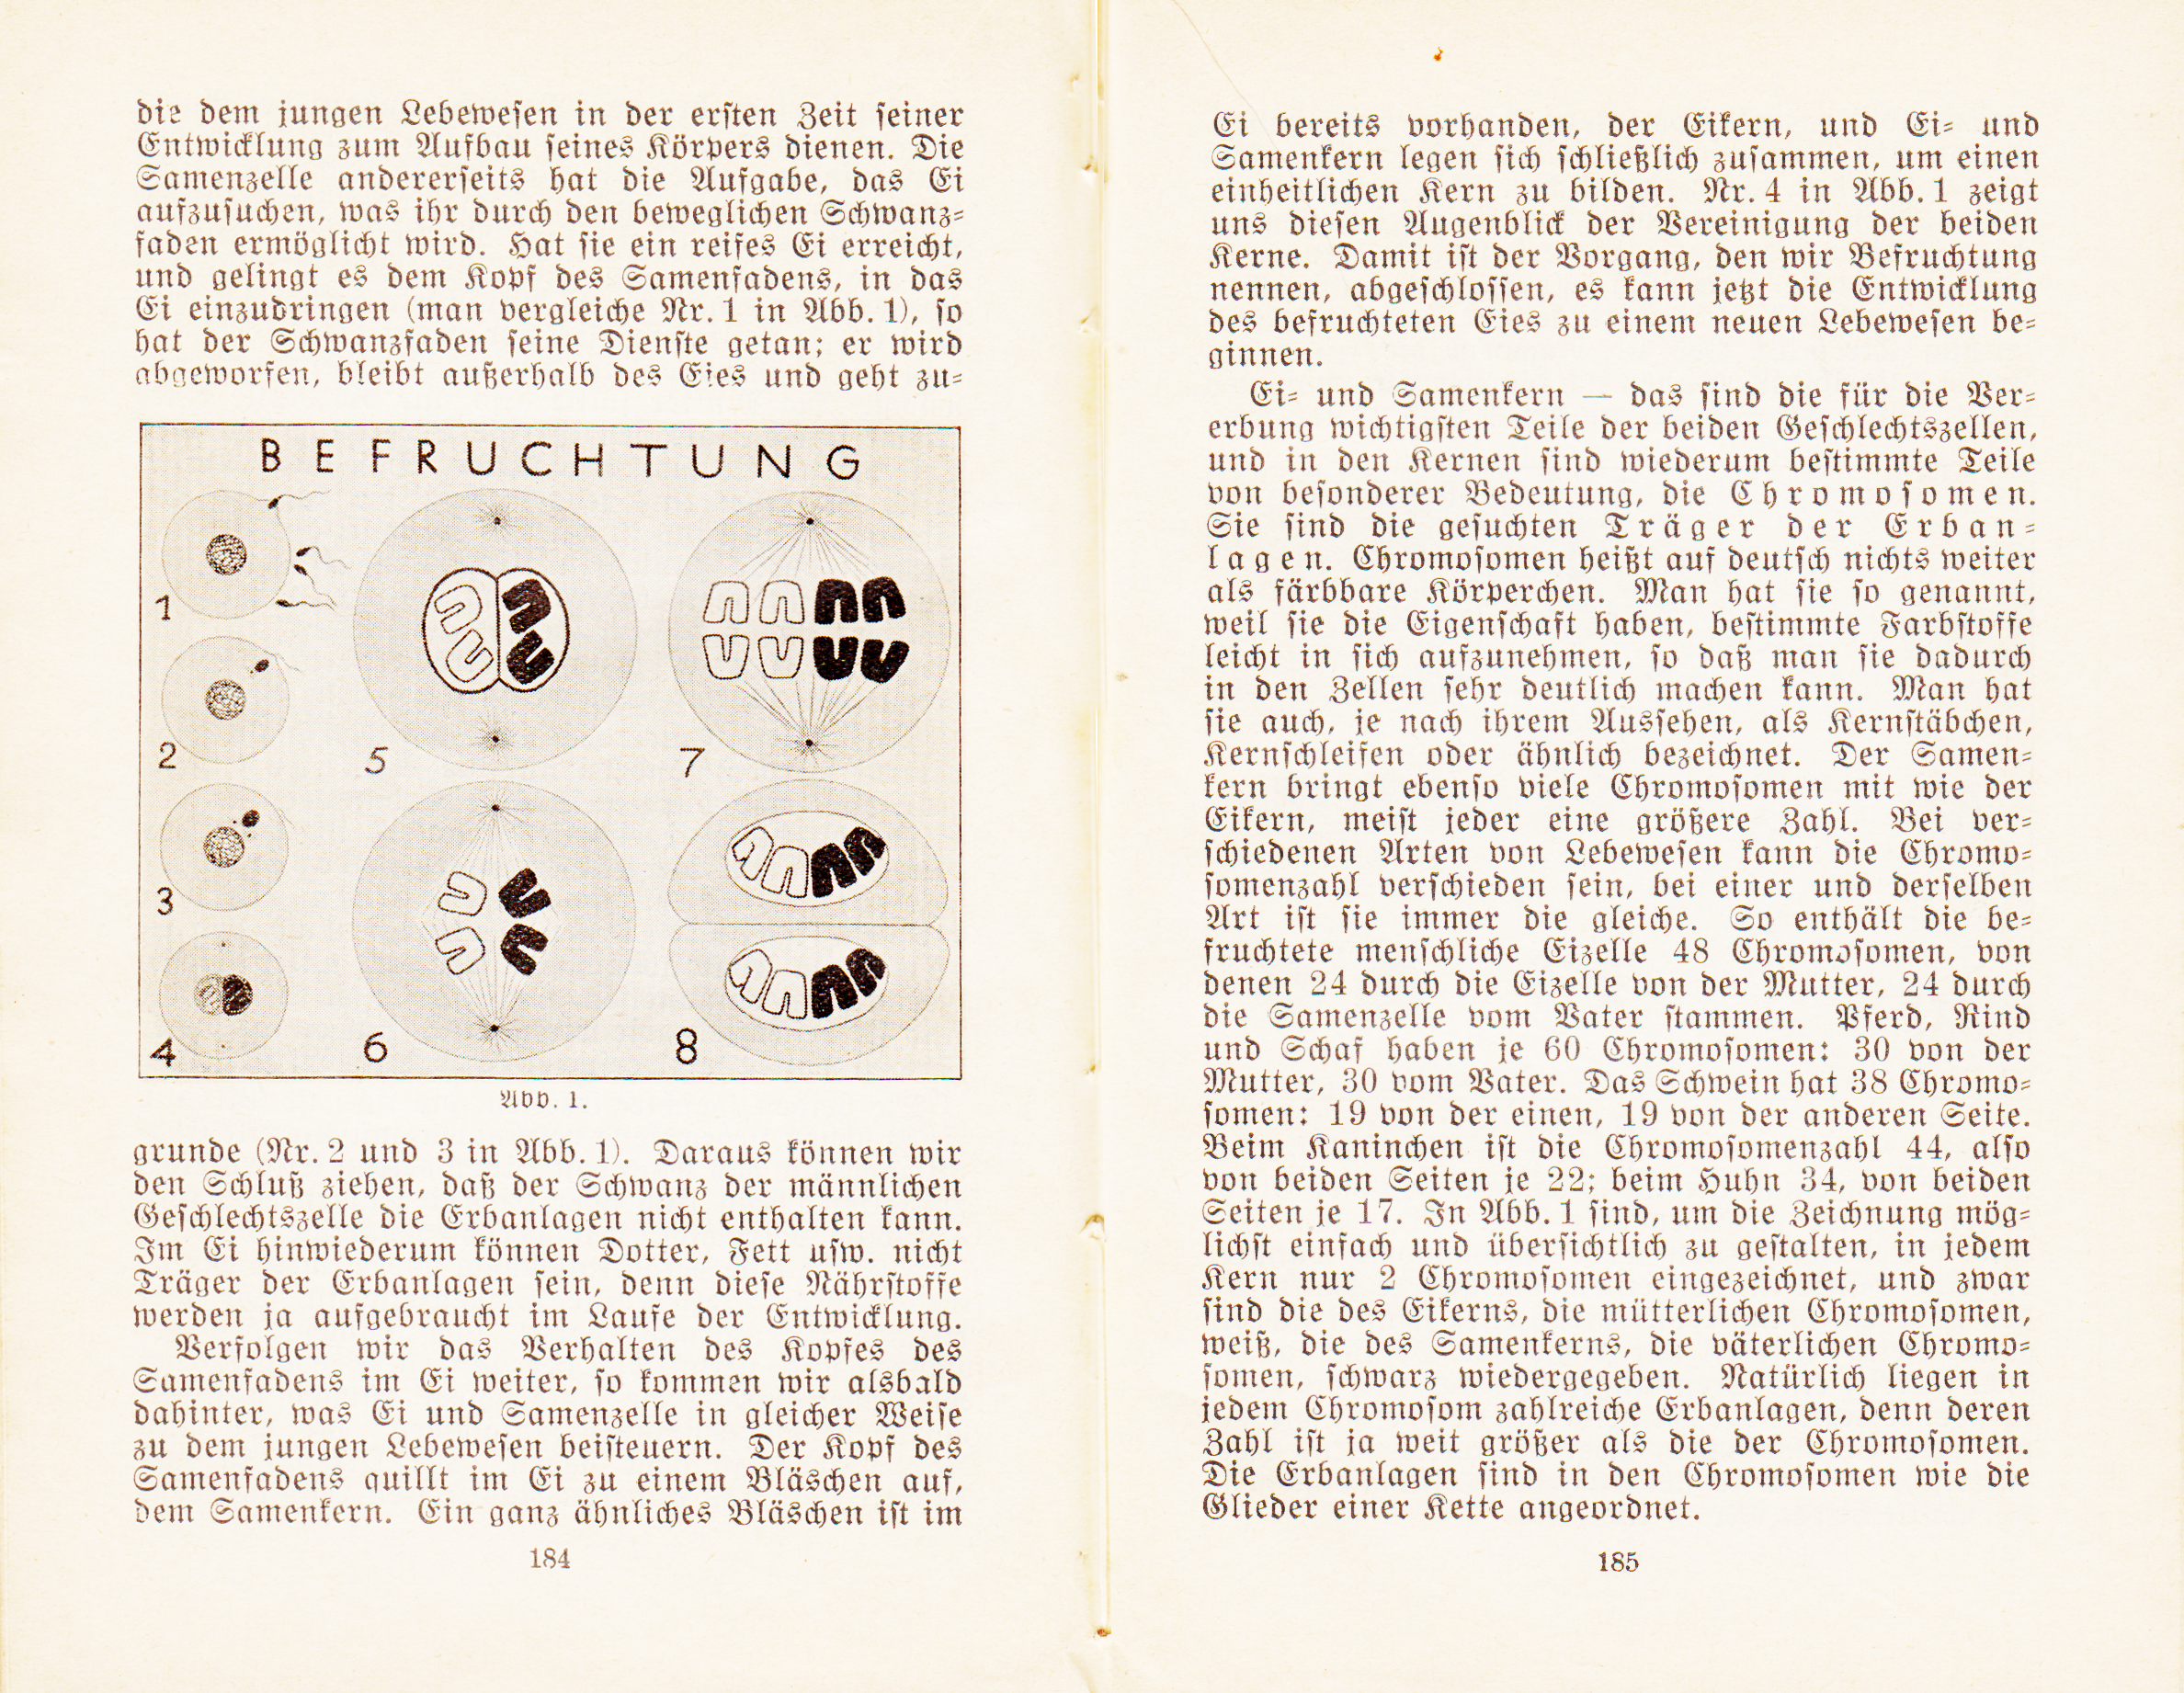
Die beiden Geschlechtszellen, die sich zur Bildung eines neuen Lebewesens vereinigen, müssen alle Erbanlagen, die das Kind von seinen beiden Eltern erbt, enthalten. Nun sind aber Ei und Samenzelle, rein äußerlich betrachtet, sehr verschiedenartige Gebilde. Das Ei ist eine verhältnismäßig große, meist runde, unbewegliche Zelle. Die Samenzelle ist sehr viel kleiner, fadenförmig, daher auch Samenfaden genannt, und vermittels des langen Schwanzfadens sehr beweglich. Diese Unterschiede hängen mit den verschiedenen Aufgaben zusammen, die Ei und Samenfaden zunächst haben. Die Eizelle ist mit Dotter, Fett und anderen Nährstoffen reich beladen, die dem jungen Lebewesen in der ersten Zeit seiner Entwicklung zum Aufbau seines Körpers dienen. Die Samenzelle andererseits hat die Aufgabe, das Ei aufzusuchen, was ihr durch den beweglichen Schwanzfaden ermöglicht wird. Hat sie ein reifes Ei erreicht, und gelingt es dem Kopf des Samenfadens, in das Ei einzubringen (man vergleiche Nr. 1 in Abb. 1), so hat der Schwanzfaden seine Dienste getan; er wird abgeworfen, bleibt außerhalb des Eies und geht zugrunde (Nr. 2 und 3 in Abb. 1).
App. 1.
Daraus können wir den Schluss ziehen, dass der Schwanz der männlichen Geschlechtszelle die Erbanlagen nicht enthalten kann. Im Ei hinwiederum können Dotter, Fett usw. nicht Träger der Erbanlagen sein, denn diese Nährstoffe werden ja aufgebraucht im Laufe der Entwicklung.
Verfolgen wir das Verhalten des Kopfes des Samenfadens im Ei weiter, so kommen wir alsbald dahinter, was Ei und Samenzelle in gleicher Weise zu dem jungen Lebewesen beisteuern. Der Kopf des Samenfadens quillt im Ei zu einem Bläschen auf, dem Samenkern. Ein ganz ähnliches Bläschen ist im Ei bereits vorhanden, der Eikern, und Ei- und Samenkern legen sich schließlich zusammen, um einen einheitlichen Kern zu bilden. Nr. 4 in Abb. 1 zeigt uns diesen Augenblick der Vereinigung der beiden Kerne. Damit ist der Vorgang, den wir Befruchtung nennen, abgeschlossen, es kann jetzt die Entwicklung des befruchteten Eies zu einem neuen Lebewesen beginnen.
Ei- und Samenkern – das sind die für die Vererbung wichtigsten Teile der beiden Geschlechtszellen, und in den Kernen sind wiederum bestimmte Teile von besonderer Bedeutung, die Chromosomen. Sie sind die gesuchten Träger der Erbanlagen. Chromosomen heißt auf Deutsch nichts weiter als färbbare Körperchen. Man hat sie so genannt, weil sie die Eigenschaft haben, bestimmte Farbstoffe leicht in sich aufzunehmen, so dass man sie dadurch in den Zellen sehr deutlich machen kann. Man hat sie auch, je nach ihrem Aussehen, als Kernstäbchen, Kernschleifen oder ähnlich bezeichnet. Der Samenkern bringt ebenso viele Chromosomen mit wie der Eikern, meist jeder eine größere Zahl. Bei verschiedenen Arten von Lebewesen kann die Chromosomenzahl verschieden sein, bei einer und derselben Art ist sie immer die gleiche. So enthält die befruchtete menschliche Eizelle 48 Chromosomen, von denen 24 durch die Eizelle von der Mutter, 24 durch die Samenzelle vom Vater stammen. Pferd, Rind und Schaf haben je 60 Chromosomen: 30 von der Mutter, 30 vom Vater. Das Schwein hat 38 Chromosomen: 19 von der einen, 19 von der anderen Seite. Beim Kaninchen ist die Chromosomenzahl 44, also von beiden Seiten je 22; beim Huhn 34, von beiden Seiten je 17. In Abb. 1 sind, um die Zeichnung möglichst einfach und übersichtlich zu gestalten, in jedem Kern nur 2 Chromosomen eingezeichnet, und zwar sind die des Eikerns, die mütterlichen Chromosomen, weiß, die des Samenkerns, die väterlichen Chromosomen, schwarz wiedergegeben. Natürlich liegen in jedem Chromosom zahlreiche Erbanlagen, denn deren Zahl ist ja weit größer als die der Chromosomen. Die Erbanlagen sind in den Chromosomen wie die Glieder einer Kette angeordnet.
Abb. 2.
Sobald Ei- und Samenkern sich vereinigt haben, werden die Chromosomen, die bis dahin aufgelockert in den Kernen lagen, deutlicher. Sie nehmen ihre typische Gestalt an, in Abb. 1 sind sie als hufeisenförmige Gebilde gezeichnet. Außerhalb des Kernes, im Leib der Eizelle, bildet sich jetzt eine sogenannte Teilungsspindel aus, es beginnt die erste Kern- und Zellteilung (Nr. 5 in Abb. 1). Nachdem die Hülle des Kerns aufgelöst ist, ordnen sich die vier Chromosomen in der Mitte der Spindel an (Nr. 6, Abb. 1) und werden der Länge nach geteilt, so dass aus den vier Chromosomen acht entstehen (Nr. 7, Abb. 1). Von den beiden Teilungshälften jedes Chromosoms wandert die eine Hälfte an den einen, die andere Hälfte an den anderen Spindelpol. Gleichzeitig schnürt sich die ganze Zelle senkrecht zur Achse der Spindel durch, d. H. es tritt eine Trennungswand auf, die die Zelle in zwei zerlegt. Jede der beiden Zellen besitzt wieder- um vier Chromosomen, zwei mütterliche und zwei väterliche, um die sich am Ende der Teilung eine neue Kernhülle bildet (Nr. 8, Abb. 1).
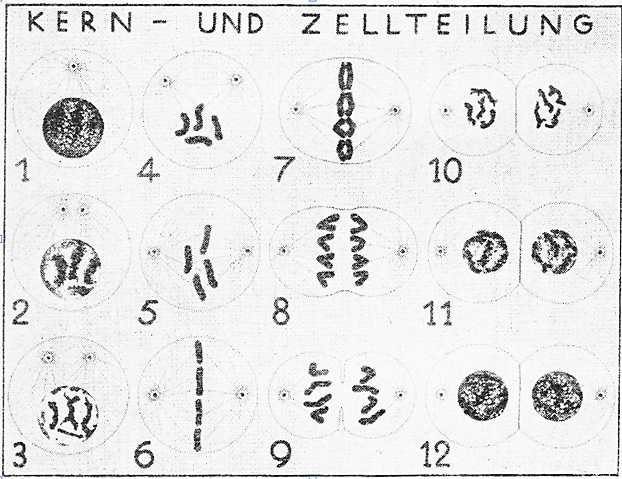
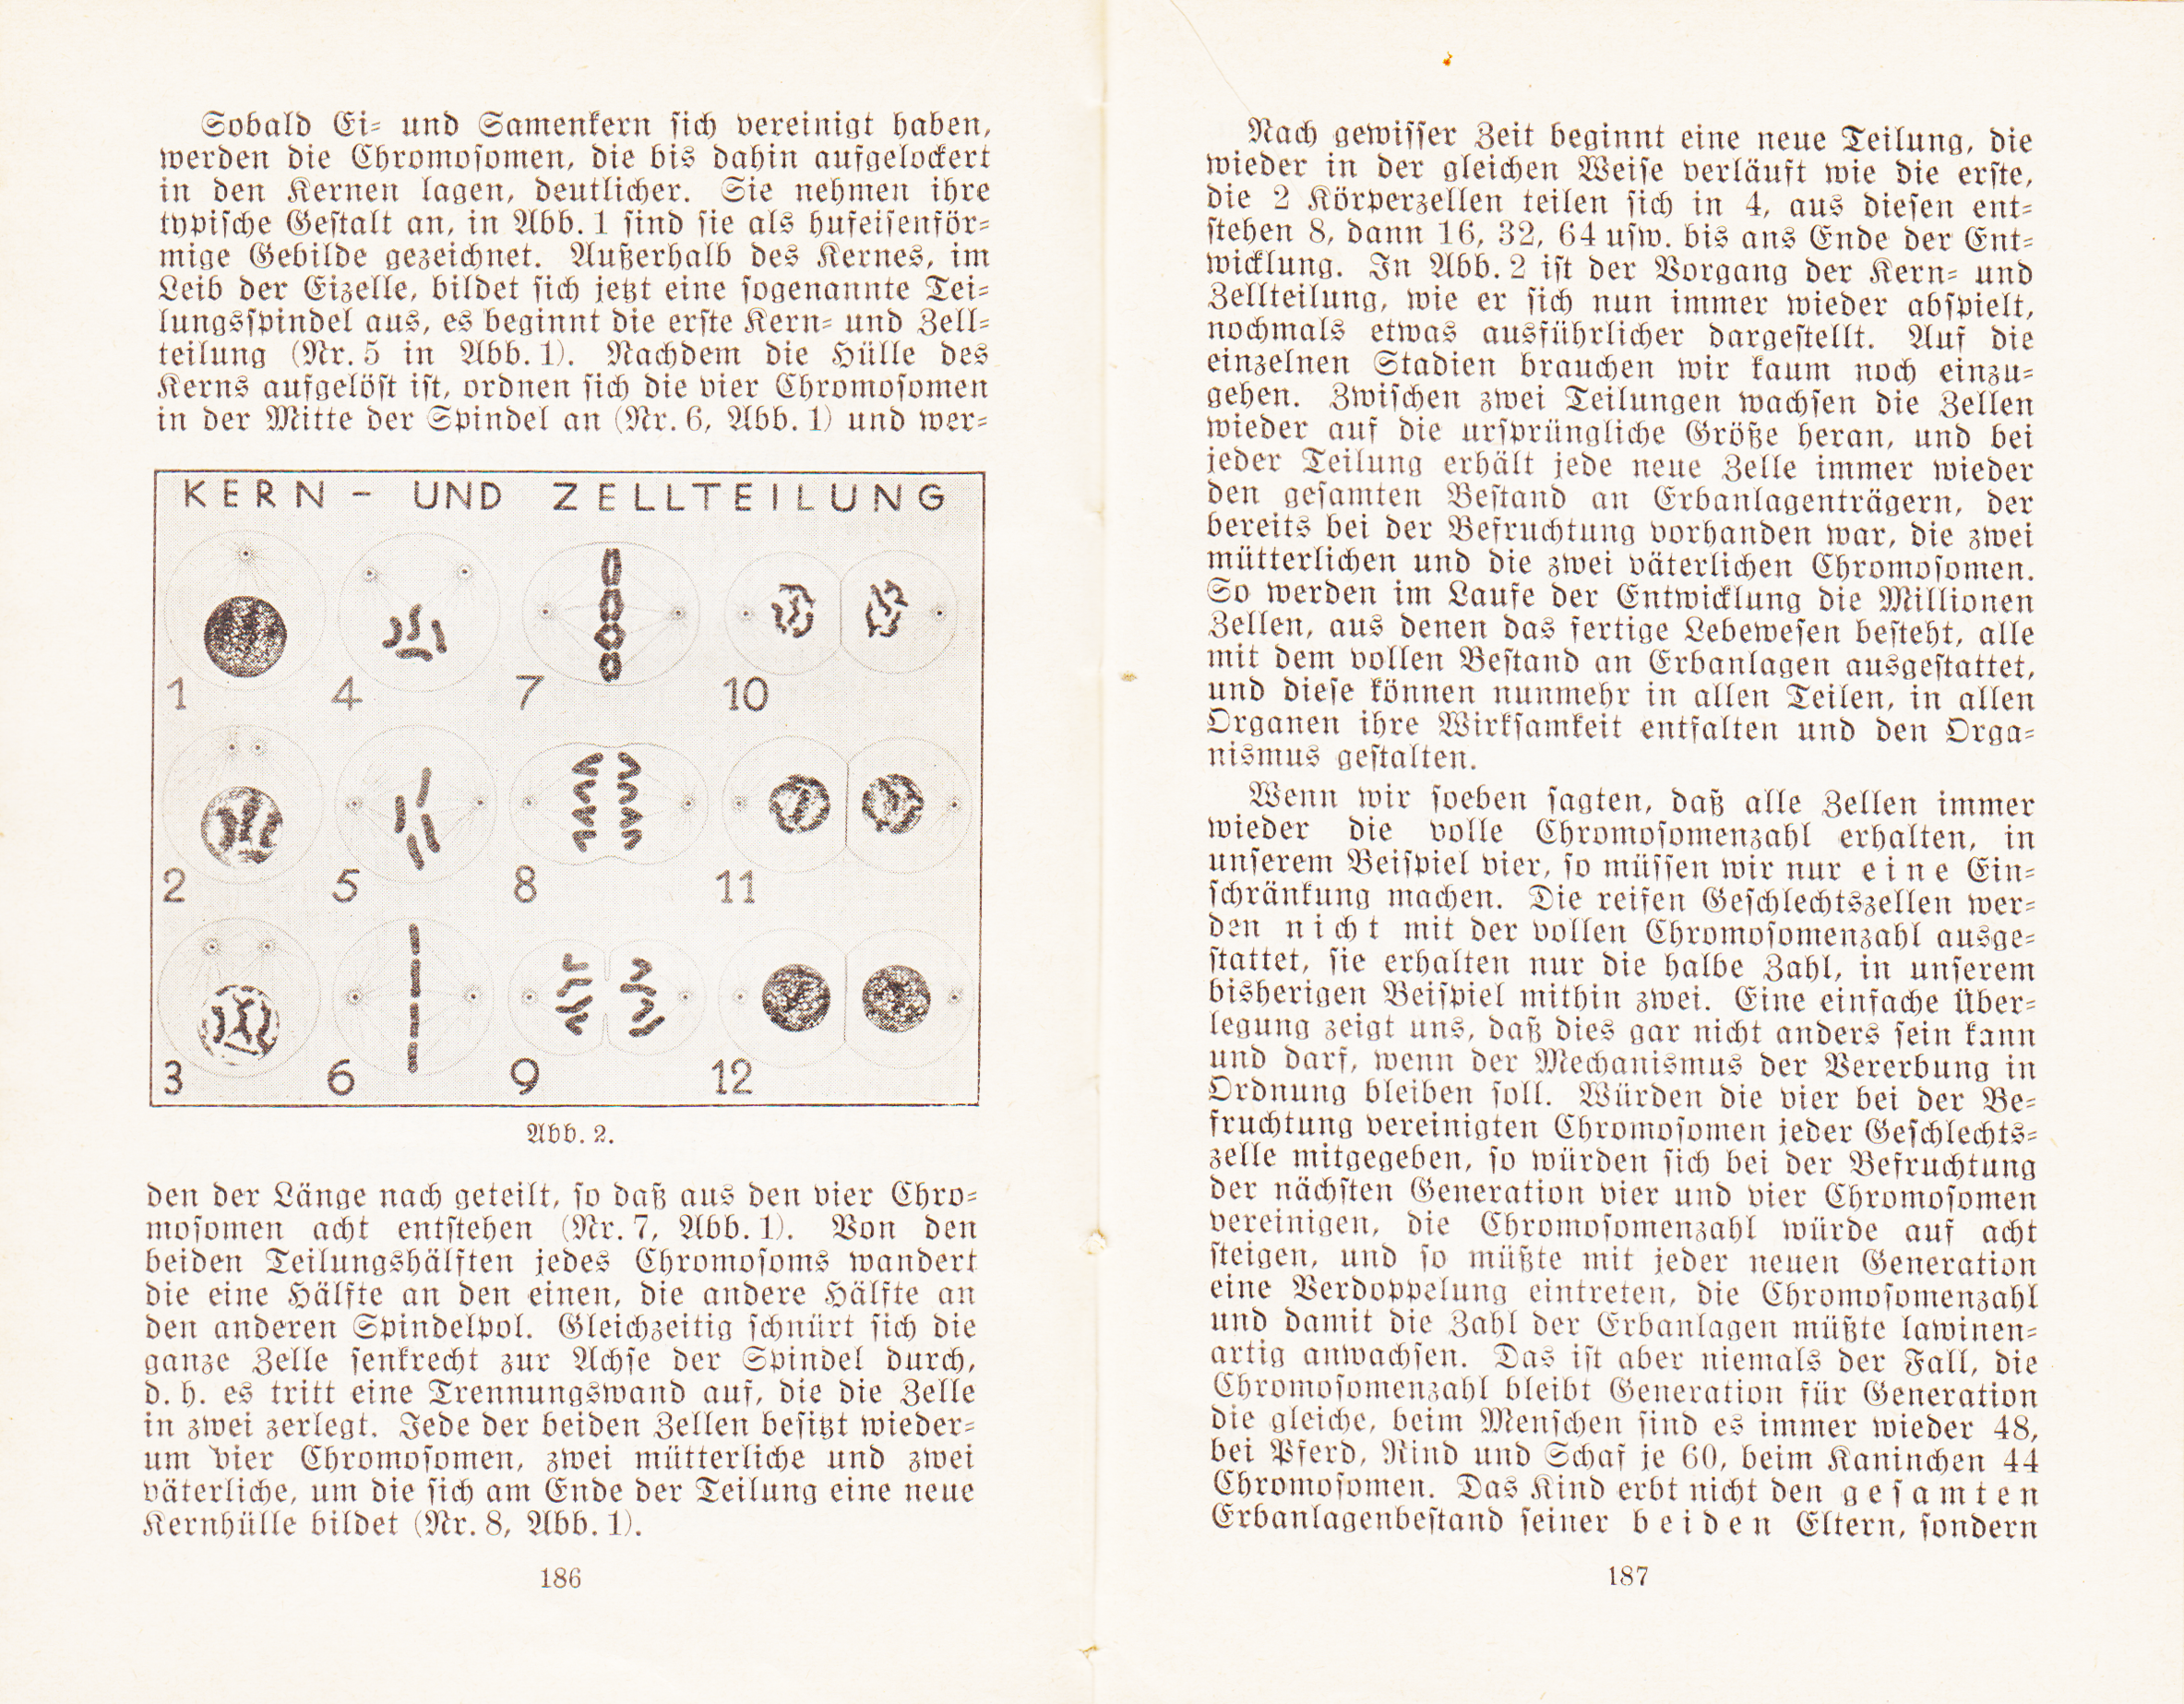
Nach gewisser Zeit beginnt eine neue Teilung, die wieder in der gleichen Weise verläuft wie die erste, die 2 Körperzellen teilen sich in 4, aus diesen entstehen 8, dann 16, 32, 64 usw. bis ans Ende der Entwicklung. In Abb. 2 ist der Vorgang der Kern- und Zellteilung, wie er sich nun immer wieder abspielt, nochmals etwas ausführlicher dargestellt. Auf die einzelnen Stadien brauchen wir kaum noch einzugehen. Zwischen zwei Teilungen wachsen die Zellen wieder auf die ursprüngliche Größe heran, und bei jeder Teilung erhält jede neue Zelle immer wieder den gesamten Bestand an Erbanlagenträgern, der bereits bei der Befruchtung vorhanden war, die zwei mütterlichen und die zwei väterlichen Chromosomen. So werden im Laufe der Entwicklung die Millionen Zellen, aus denen das fertige Lebewesen besteht, alle mit dem vollen Bestand an Erbanlagen ausgestattet, und diese können nunmehr in allen Teilen, in allen Organen ihre Wirksamkeit entfalten und den Organismus gestalten.
Wenn wir soeben sagten, daß alle Zellen immer wieder die volle Chromosomenzahl erhalten, in unserem Beispiel vier, so müssen wir nur eine Einschränkung machen. Die reifen Geschlechtszellen wer- den nicht mit der vollen Chromosomenzahl ausgestattet, sie erhalten nur die halbe Zahl, in unserem bisherigen Beispiel mithin zwei. Eine einfache Überlegung zeigt uns, dass dies gar nicht anders sein kann und darf, wenn der Mechanismus der Vererbung in Ordnung bleiben soll. Würden die vier bei der Befruchtung vereinigten Chromosomen jeder Geschlechtszelle mitgegeben, so würden sich bei der Befruchtung der nächsten Generation vier und vier Chromosomen vereinigen, die Chromosomenzahl würde auf acht steigen, und so müsste mit jeder neuen Generation eine Verdoppelung eintreten, die Chromosomenzahl und damit die Zahl der Erbanlagen müsste lawinenartig anwachsen. Das ist aber niemals der Fall, die Chromosomenzahl bleibt Generation für Generation die gleiche, beim Menschen sind es immer wieder 48, bei Pferd, Rind und Schaf je 60, beim Kaninchen 44 Chromosomen. Das Kind erbt nicht den gesamten Erbanlagenbestand seiner beiden Eltern, sondern es erbt von jedem Elter nur die Hälfte von dessen Erbanlagen, so dass der Bestand an Erbanlagen zahlenmäßig immer derselbe bleiben muss.
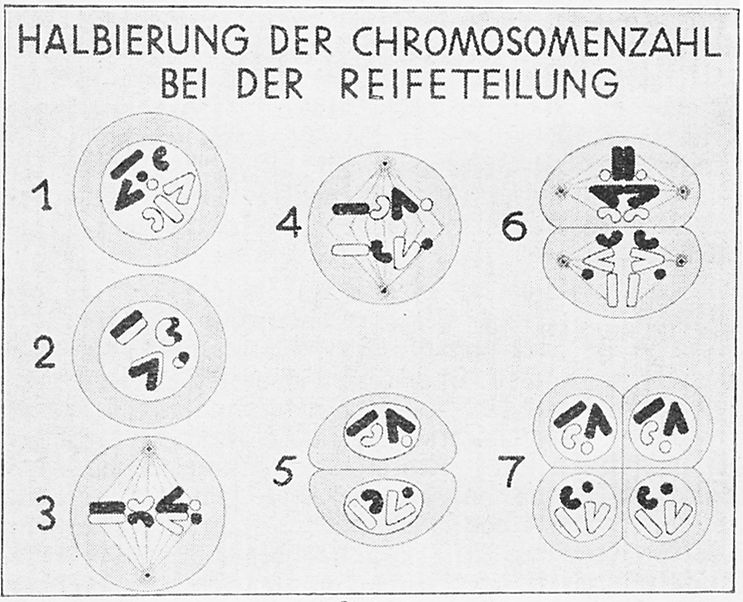
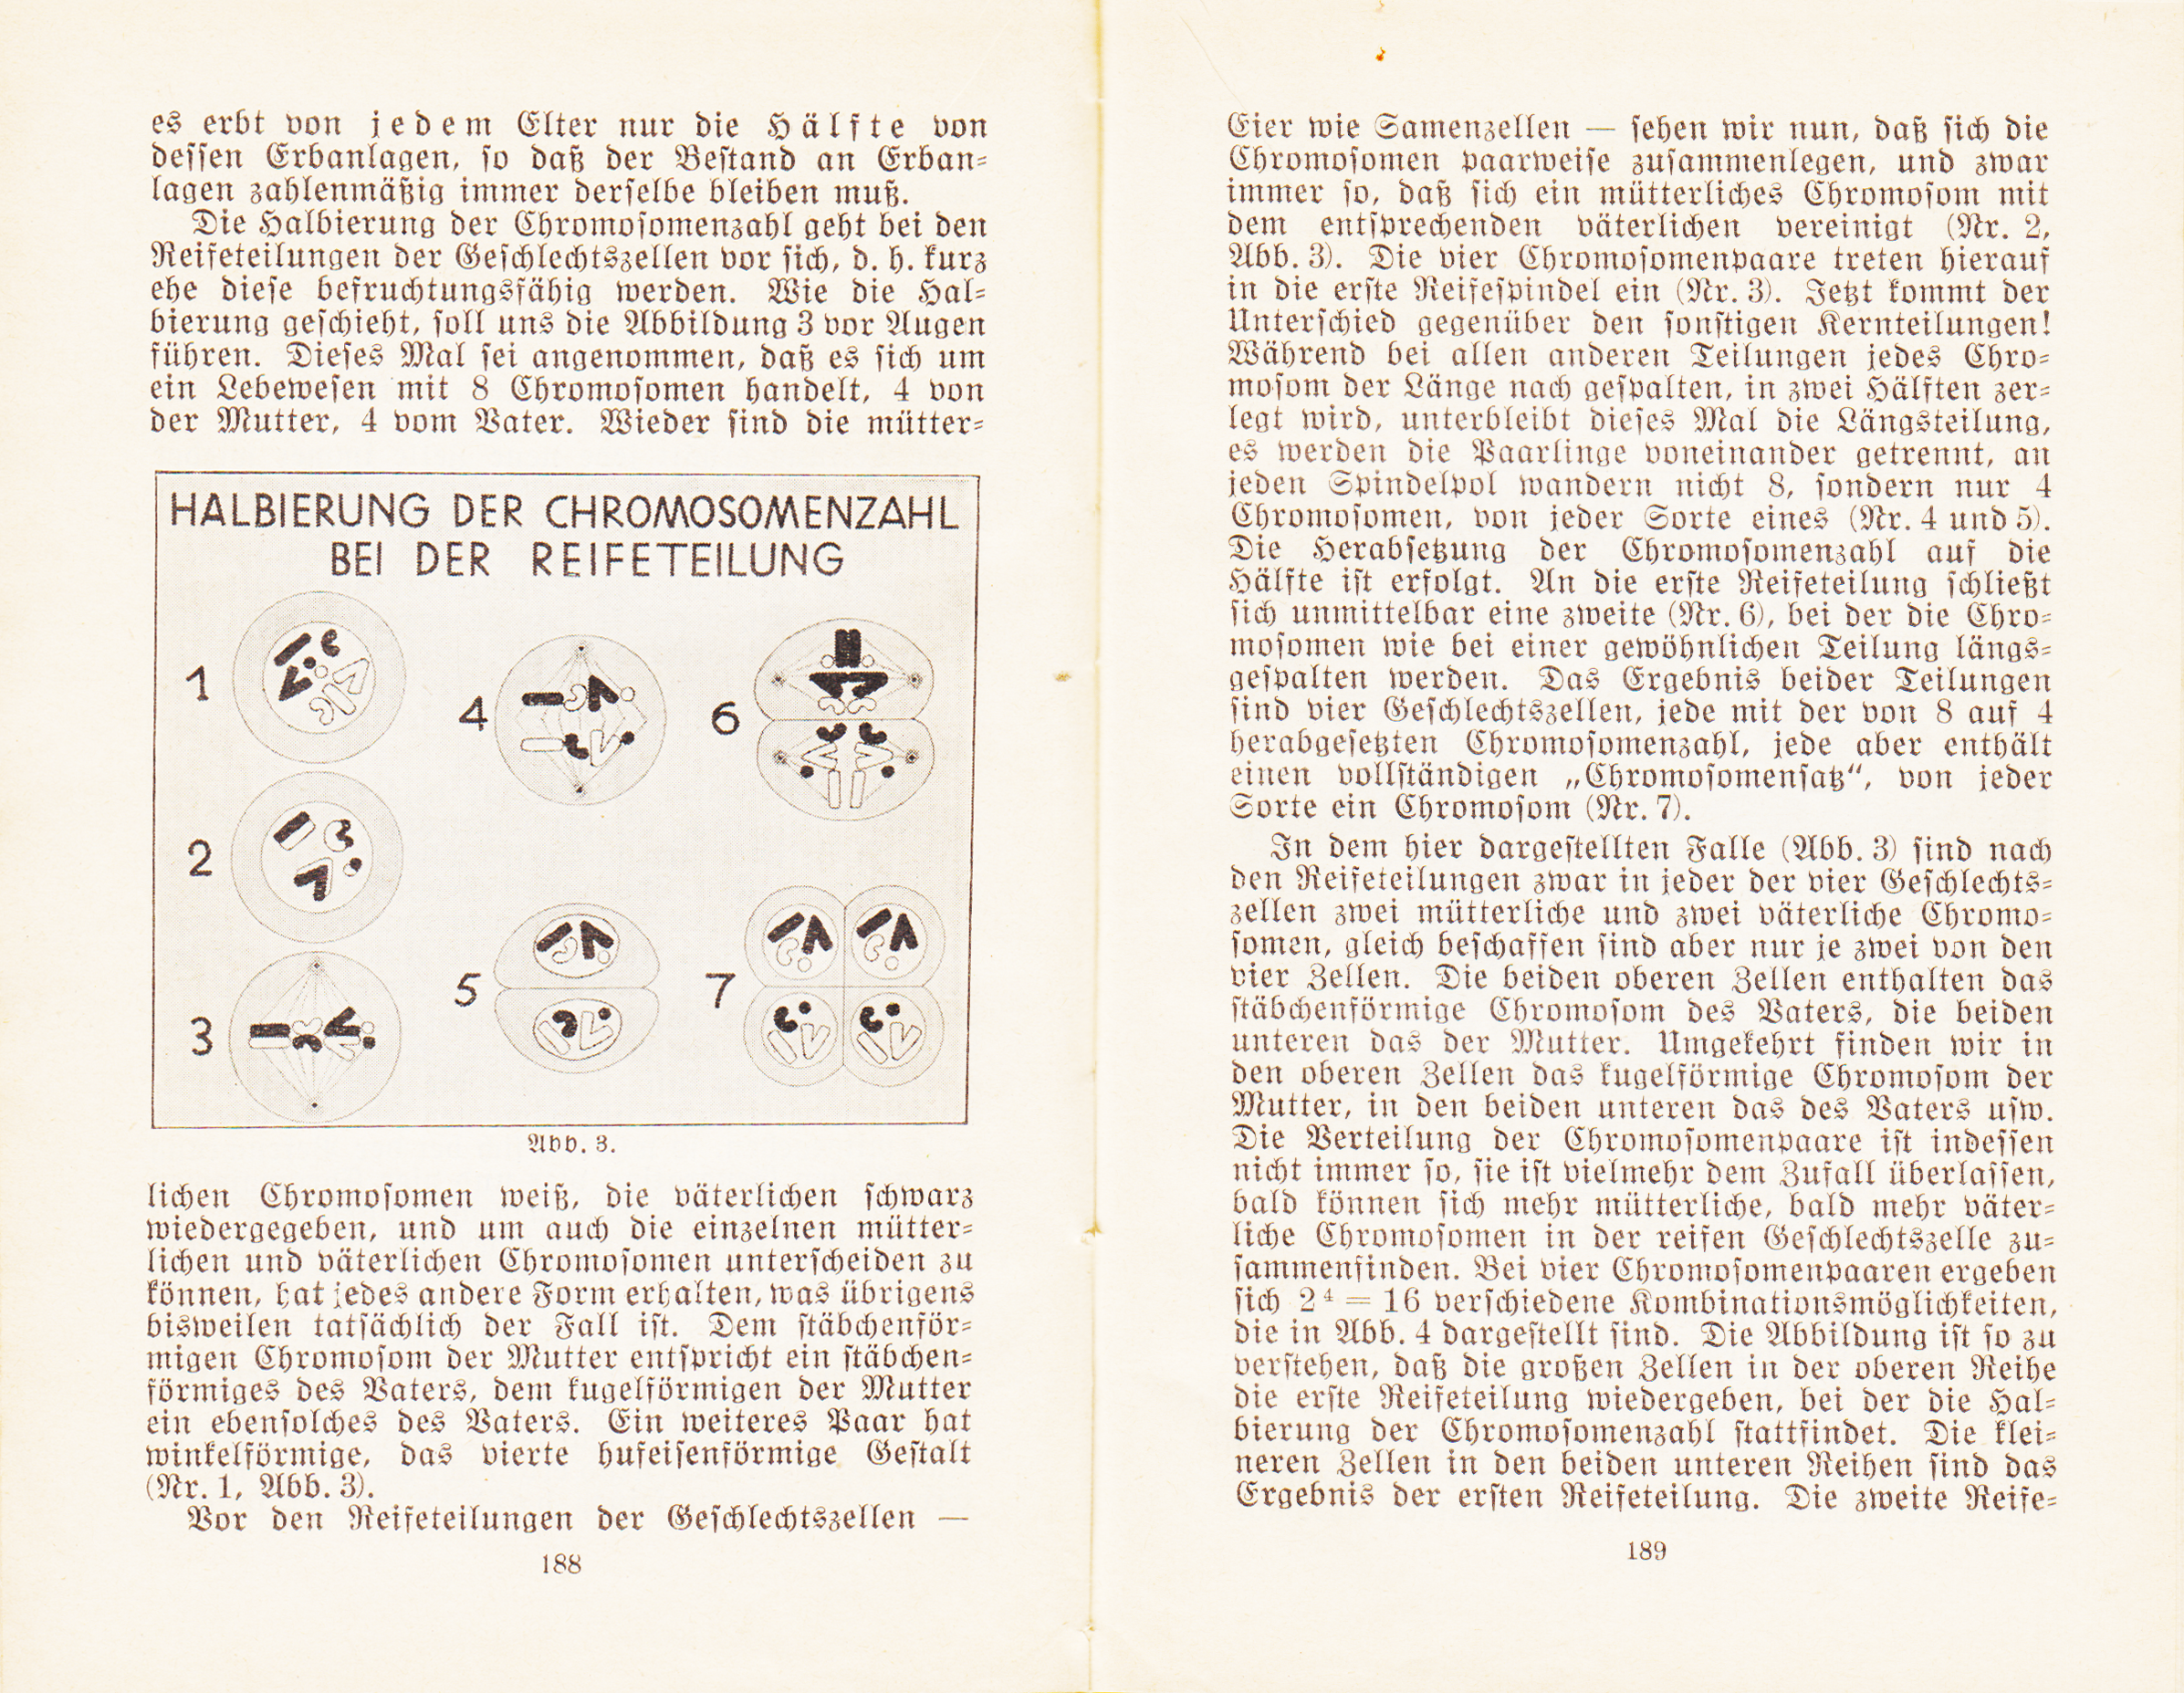
Die Halbierung der Chromosomenzahl geht bei den Reifeteilungen der Geschlechtszellen vor sich, d. h. kurz ehe diese befruchtungsfähig werden. Wie die Halbierung geschieht, soll uns die Abbildung 3 vor Augen führen. Dieses Mal sei angenommen, dass es sich um ein Lebewesen mit 8 Chromosomen handelt, 4 von der Mutter, 4 vom Vater. Wieder sind die mütterlichen Chromosomen weiß, die väterlichen schwarz wiedergegeben, und um auch die einzelnen mütterichen und väterlichen Chromosomen unterscheiden zu können, hat jedes andere Form erhalten, was übrigens bisweilen tatsächlich der Fall ist.
Abb. 3.
Dem stäbchenförmigen Chromosom der Mutter entspricht ein stäbchenförmiges des Vaters, dem kugelförmigen der Mutter ein ebensolches des Vaters. Ein weiteres Paar hat winkelförmige, das vierte hufeisenförmige Gestalt (Nr. 1, Abb. 3). Vor den Reifeteilungen der Geschlechtszellen – Eier wie Samenzellen – sehen wir nun, dass sich die Chromosomen paarweise zusammenlegen, und zwar immer so, dass sich ein mütterliches Chromosom mit dem entsprechenden väterlichen vereinigt (Nr. 2, Abb. 3). Die vier Chromosomenpaare treten hierauf in die erste Reifespindel ein (Nr. 3). Jetzt kommt der Unterschied gegenüber den sonstigen Kernteilungen! Während bei allen anderen Teilungen jedes Chromosom der Länge nach gespalten, in zwei Hälften zerlegt wird, unterbleibt dieses Mal die Längsteilung, es werden die Paarlinge voneinander getrennt, an jeden Spindelpol wandern nicht 8, sondern nur 4 Chromosomen, von jeder Sorte eines (Nr. 4 und 5). Die Herabsetzung der Chromosomenzahl auf die Hälfte ist erfolgt. An die erste Reifeteilung schließt sich unmittelbar eine zweite (Nr. 6), bei der die Chromosomen wie bei einer gewöhnlichen Teilung längsgespalten werden. Das Ergebnis beider Teilungen sind vier Geschlechtszellen, jede mit der von 8 auf 4 herabgesetzten Chromosomenzahl, jede aber enthält einen vollständigen „Chromosomensatz“, von jeder Sorte ein Chromosom (Nr. 7).
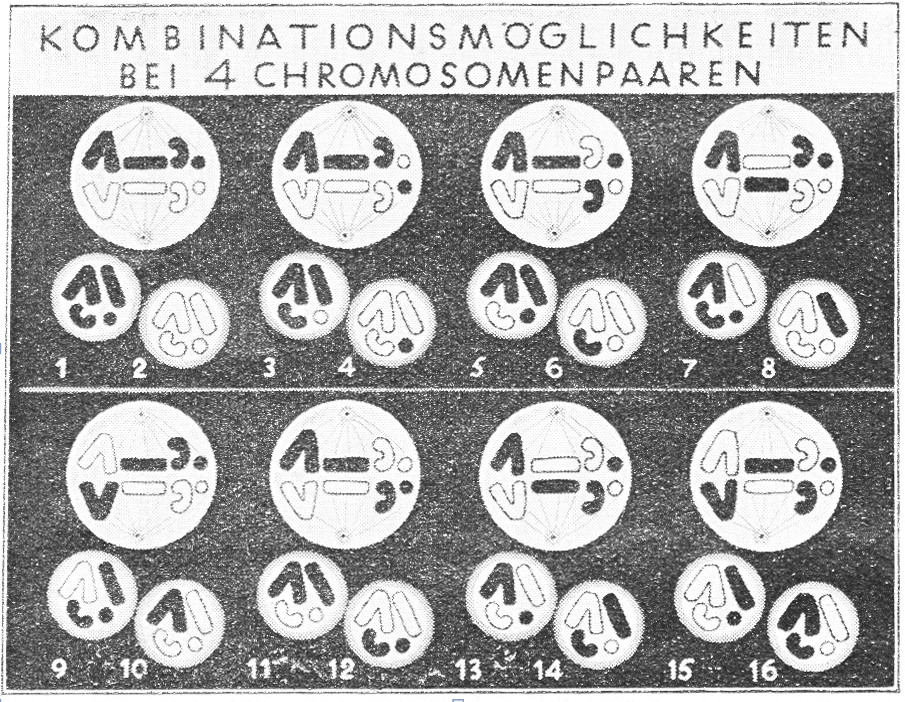
In dem hier dargestellten Falle (Abb. 3) sind nach den Reifeteilungen zwar in jeder der vier Geschlechtszellen zwei mütterliche und zwei väterliche Chromosomen, gleich beschaffen sind aber nur je zwei von den vier Zellen. Die beiden oberen Zellen enthalten das stäbchenförmige Chromosom des Vaters, die beiden unteren das der Mutter. Umgekehrt finden wir in den oberen Zellen das kugelförmige Chromosom der Mutter, in den beiden unteren das des Vaters usw. Die Verteilung der Chromosomenpaare ist indessen nicht immer so, sie ist vielmehr dem Zufall überlassen, bald können sich mehr mütterliche, bald mehr väterliche Chromosomen in der reifen Geschlechtszelle zusammenfinden. Bei vier Chromosomenpaaren ergeben sich 2 = 16 verschiedene Kombinationsmöglichkeiten, die in Abb. 4 dargestellt sind. Die Abbildung ist so zu verstehen, dass die großen Zellen in der oberen Reihe die erste Reifeteilung wiedergeben, bei der die Halbierung der Chromosomenzahl stattfindet. Die kleineren Zellen in den beiden unteren Reihen sind das Ergebnis der ersten Reifeteilung. Die zweite Reifeteilung ist unberücksichtigt geblieben; sie unterscheidet sich ja nicht von einer gewöhnlichen Teilung und führt nur zu einer Verdoppelung der Zellenzahl. Dass durch die Reifeteilung die vier mütterlichen Chromosomen von den vier väterlichen wieder getrennt werden, wie es in den Kombinationen 1 und 2 dargestellt ist, wird verhältnismäßig selten vorkommen, häufiger werden die Kombinationen sein, wo Chromosomen verschiedener Abkunft vereinigt sind. Je größer die Zahl der Chromosomen, umso größer die Zahl der Kombinationsmöglichkeiten. Bei 10 Chromosomenpaaren haben wir bereits 210 = 1024 Möglichkeiten!
Abb. 4.
Und nun stelle man sich vor, dass wir zwei Rassen miteinander gekreuzt haben, die sich in einer größeren Zahl von Merkmalen unterscheiden. Der Einfachheit halber rechnen wir nur mit vier Merkmalspaaren: Normalhaar, Schwarz, Scheckung, Hängeohr auf der einen Seite, Kurzhaar, Blau, Nichtscheckung, Stehohr auf der anderen Seite. Die Erbanlage für Normalhaar liege in dem winkelförmigen schwarzen Chromosom, die Erbanlage für Kurzhaar in dem winkelförmigen weißen Chromosom. Die Erbanlage für Schwarz liege in dem stäbchenförmigen schwarzen Chromosom, die Erbanlage für Blau in dem ent- sprechenden weißen. Die Erbanlagen für Scheckung und Nichtscheckung mögen in dem schwarzen bzw. weißen hufeisenförmigen Chromosom liegen und schließlich die Erbanlagen für Hänge- und Stehohr in den kugelförmigen Chromosomen. Die 16 verschiedenen Möglichkeiten, wie sich dann bei der Reifung der Geschlechtszellen des Kreuzungstieres die Erbanlagen zusammenfinden können, vermag jeder mit Hilfe der Abbildung 4 leicht selbst zusammenzustellen.
Bei allen Lebewesen, Pflanze, Tier und Mensch, sind die Chromosomen die Träger der Erbanlagen, bei allen werden die Chromosomen in der gleichen Weise von Zelle zu Zelle und von Generation zu Generation weitergegeben, wie wir es hier in Kürze beschrieben haben. Der Chromosomenmechanismus aber ist der Schlüssel für das Verständnis der Vererbungsgesetze, er bildet die Grundlage der Vererbung.
Abbildungen aus der Originalquelle


Zusammenfassung / Fazit
Rezension zu:
Die Grundlagen der Vererbung von Hans Nachtsheim (RDKL Jahrbuch 1936)
Hans Nachtsheims Beitrag Die Grundlagen der Vererbung aus dem Jahr 1936 ist ein kompaktes, didaktisch geschickt aufgebautes Lehrstück früher genetischer Aufklärung für Kaninchenzüchter. Der Text verbindet anschauliche Beispiele aus der Tierzucht mit den damals aktuellen Erkenntnissen der Zytogenetik und vermittelt so ein grundlegendes Verständnis der Vererbungsvorgänge — aus heutiger Sicht zugleich bemerkenswert klar und historisch aufschlussreich.
Inhaltliche Stärke: Präzise Darstellung der Chromosomentheorie
Nachtsheim führt seine Leser Schritt für Schritt vom Alltagswissen der Züchter („Aus einem Kaninchenei entsteht immer ein Kaninchen“) hin zur zentralen Einsicht der modernen Genetik:
„Wir wissen heute, dass nicht die Merkmale selbst vererbt werden, sondern nur die Anlagen dazu.“
Diese Unterscheidung zwischen Merkmal und Erbanlage bildet den roten Faden des Textes. Besonders gelungen ist die anschauliche Erklärung der Chromosomen als Träger der Erbanlagen. Nachtsheim beschreibt die Befruchtung, die Kernverschmelzung und die Chromosomenverteilung mit einer Klarheit, die selbst heute noch didaktisch überzeugt. Seine Darstellung der Mitose und Meiose ist für ein populärwissenschaftliches Publikum erstaunlich präzise und weitgehend frei von Vereinfachungen, die den Mechanismus verfälschen würden.
Didaktische Qualität: Bildhafte Sprache und klare Beispiele
Der Text ist durchzogen von Beispielen aus der Kaninchenzucht — Normalhaar vs. Kurzhaar, Schwarz vs. Blau, Scheckung vs. Nichtscheckung. Diese Beispiele sind nicht nur praxisnah, sondern dienen als Brücke zwischen abstrakter Genetik und züchterischer Realität. Besonders eindrucksvoll ist die Darstellung der Kombinationsmöglichkeiten bei der Reifeteilung, die Nachtsheim mit einer Mischung aus anschaulichen Zeichnungen und klarer Argumentation erläutert.
Seine Erklärung der zufälligen Chromosomenverteilung („Bei 10 Chromosomenpaaren haben wir bereits 2¹⁰ = 1024 Möglichkeiten!“) zeigt, wie er mathematische Einsichten in eine allgemein verständliche Form bringt.
Historische Einordnung: Zwischen Wissenschaft und Zeitgeist
Der Text ist ein Produkt seiner Zeit — und das zeigt sich sowohl positiv als auch kritisch.
Positiv: Nachtsheim vermittelt die Chromosomentheorie der Vererbung auf dem Stand der frühen 1930er Jahre, also in einer Phase, in der die Genetik sich gerade erst als moderne Wissenschaft etablierte. Seine Darstellung ist wissenschaftlich sauber und frei von spekulativen Elementen.
Kritisch: Der Text erscheint 1936, also mitten in der Zeit der nationalsozialistischen Rassenpolitik. Obwohl dieser spezifische Artikel sich ausschließlich auf tierische Vererbungsvorgänge konzentriert und keinerlei ideologische Aussagen enthält, ist Nachtsheims Rolle im damaligen Wissenschaftssystem historisch belastet. Eine moderne Rezension muss diesen Kontext zumindest erwähnen, ohne den fachlichen Wert des Textes zu schmälern.
Bedeutung für die Kaninchenzucht
Für Züchter der 1930er Jahre war dieser Artikel ein Meilenstein: Er übersetzte die damals moderne Genetik in eine Sprache, die unmittelbar anwendbar war. Für heutige Leser — und besonders für ein Projekt wie die Enzyklopädie-Kaninchenzucht — ist der Text ein wertvolles historisches Dokument. Er zeigt:
- wie Zuchtpraxis und Genetik damals miteinander verknüpft wurden,
- wie früh die Chromosomentheorie in der Tierzucht angekommen war,
- wie sich die didaktische Vermittlung genetischer Grundlagen entwickelt hat.
Fazit
Nachtsheims Die Grundlagen der Vererbung ist ein bemerkenswert klarer, wissenschaftlich sauberer und didaktisch überzeugender Text, der die Chromosomentheorie für ein züchterisches Publikum aufbereitet. Trotz seines historischen Kontextes bleibt er ein wertvolles Dokument der Wissenschaftsgeschichte und ein anschauliches Beispiel dafür, wie Genetik in der Tierzucht vermittelt wurde.